Дисульфидные связи в волосах: цистин, химия и измерение
Что соединяет серный мостик в кератине волоса. Цистин и цистеин, химический анализ, повторное окисление и вклад связей в упругость.
В этой статье
- Что соединяет дисульфидная связь?
- Чем мостик отличается от самой белковой цепи
- Как меняется объект при выделении белка
- Что означает количество свободных SH на грамм белка
- Почему остаточный реагент мешает измерению
- Как связаны химический анализ и слабая ИК-полоса
- Почему новый кератиновый гель имеет другие связи
- Как измеряли содержание цистина в волосах?
- Почему два метода дали разные числа
- Что показали восстановление и повторное окисление
- Всегда ли меньше S–S означает меньшую упругость?
- Как находят изменённые участки кератина
- Какие вопросы решают разные исследования
- Частые вопросы
- Источники
Дисульфидные связи в волосах — ковалентные связи между атомами серы в остатках цистеина. В белковой структуре их обозначают S–S. Они участвуют в соединении участков кератиновой системы, но механическое поведение целого стержня зависит также от других взаимодействий, воды и организации материала.
Разберём химический смысл этой связи и первичные исследования: количественное определение цистина, восстановление и последующее окисление, измерение упругости и поиск модифицированных участков белка. Это объяснение лабораторной химии, без рецептур обработки волос и рекомендаций по уходу.
Что соединяет дисульфидная связь?
Кератин — белок, поэтому его цепь состоит из аминокислотных остатков. Цистеин отличается серосодержащей боковой группой. Когда две такие группы образуют дисульфидную связь, возникает соединение S–S. Связанную пару называют цистином. Поэтому слова «цистеин» и «цистин» относятся к связанным, но различным химическим понятиям.
Условная запись R–S–S–R показывает только серный мостик и два присоединённых фрагмента. Буква R заменяет остальную часть структуры; она не означает отдельный реагент или название косметического средства. Для свободной тиольной группы используют запись R–SH.
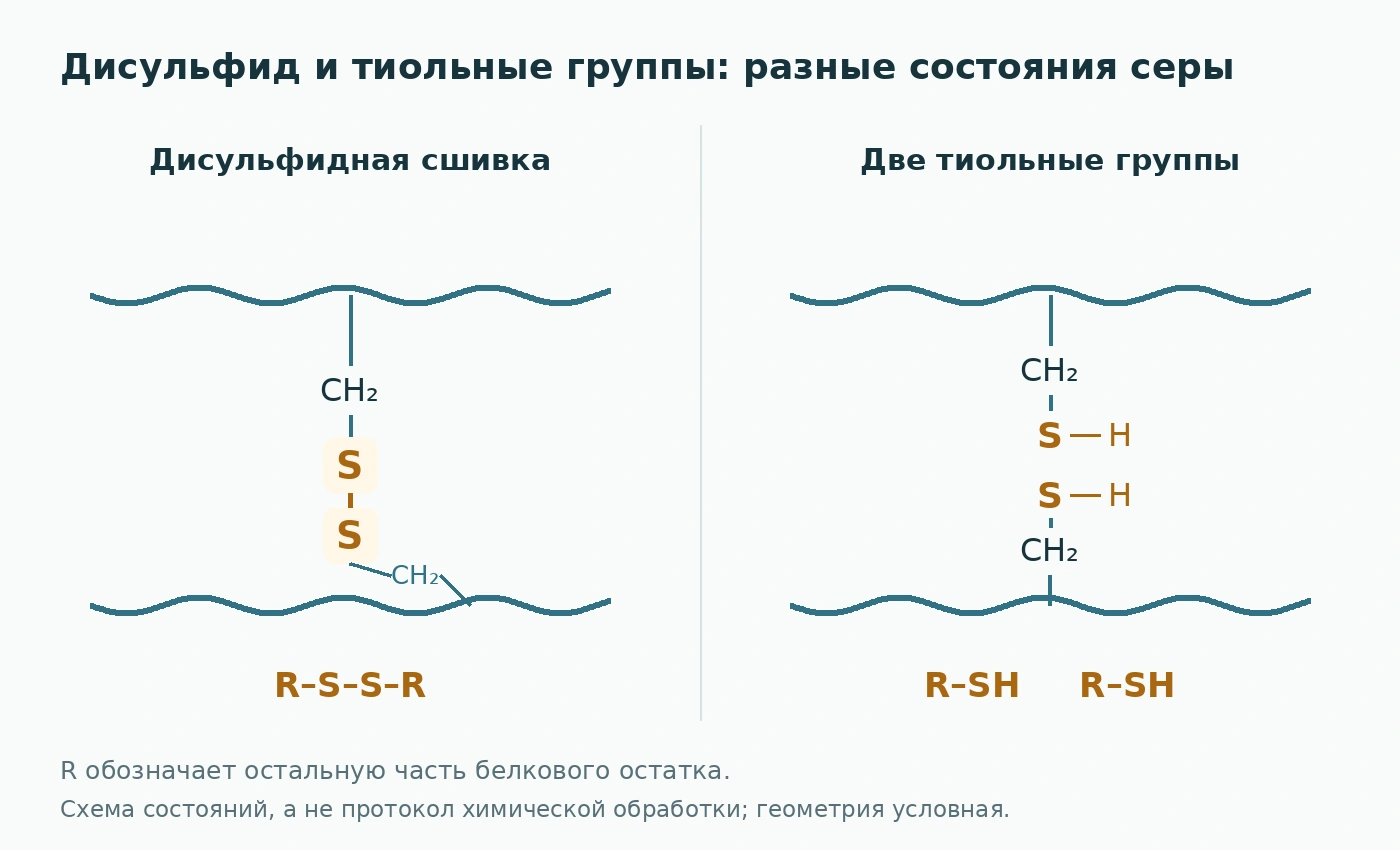
Схема показывает различие структур. Она не задаёт условия реакции, состав раствора или порядок проведения процедуры.
В работе Plowman и соавторов 2025 года отдельно рассматриваются нарушения внутри- и межбелковых дисульфидных связей. Это важное уточнение: мостик не обязательно соединяет две разные белковые молекулы. Его положение в белке и партнёр по связи имеют значение для организации материала.
Чем мостик отличается от самой белковой цепи
Пептидные связи образуют основу белковой цепи. Дисульфидная связь соединяет серосодержащие боковые группы. Если представить две цепи линиями, серный мостик будет поперечной перемычкой между определёнными точками, а не продолжением основной линии.
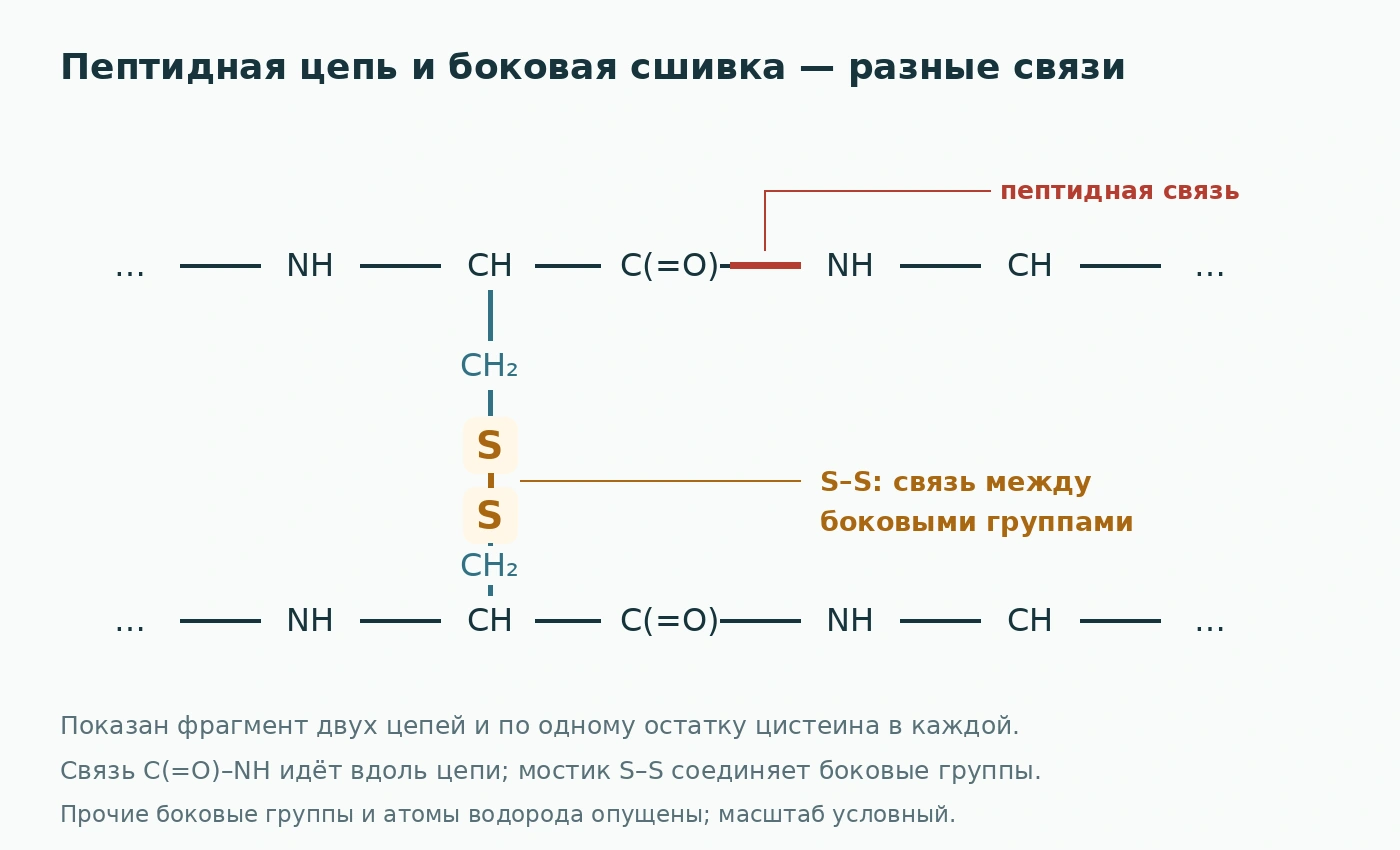
Это редакционная модель межцепочечного соединения. Она помогает различить основу цепи и боковую сшивку; количество перемычек на рисунке не отражает их содержание в реальном волосе.
У стержня есть несколько уровней организации. Слои, клетки и белковые структуры описаны в материале о строении волоса. Здесь объект другой: конкретный химический тип соединения. Его нельзя отождествлять ни с целой кутикулой, ни с отдельной видимой чешуйкой.
Как меняется объект при выделении белка
В опыте Yue исходным сырьём служили человеческие волосы, но на аналитическую стадию поступал уже выделенный кератин. Между этими объектами есть принципиальная разница. Волос — организованное волокно, а выделенный белок становится компонентом нового материала. Авторы объясняют получение растворимых отдельных молекул разрывом межмолекулярных дисульфидных связей при экстракции. Поэтому растворимость в этой работе связана с изменением связей между молекулами, а не с сохранением исходного стержня в растворе.
Внутримолекулярные связи рассматриваются отдельно. Авторы допускают, что часть таких связей тоже могла разрываться при выделении. Здесь существенна осторожная формулировка «могла»: она не означает, что исследователи установили разрушение каждого мостика внутри каждой молекулы. Различие между внутри- и межмолекулярным соединением помогает понять, почему один и тот же тип S–S может участвовать в разных уровнях организации белка.
После выделения материал проходил диализ и лиофилизацию. В таком исходном для дальнейших опытов кератине анализ Эллмана показывал очень мало свободных тиольных групп — менее 0,01 ммоль/г. Следовательно, историю экстракции и состояние подготовленного образца нельзя описать одним словом «восстановленный». В обсуждении авторы связывают низкое содержание свободных SH с наличием внутримолекулярных дисульфидных связей после очистки. Химическая форма серы в подготовленном белке здесь важнее общего обозначения предшествующей обработки.
Что означает количество свободных SH на грамм белка
Для следующей стадии Yue и соавторы дополнительно восстанавливали выделенный кератин DTT. Полученный материал обозначили Keratin-SH. Анализ Эллмана дал около 0,55 ммоль свободных тиольных групп на грамм этого материала. Два результата относятся к разным состояниям выделенного белка: менее 0,01 ммоль/г до дополнительного восстановления и около 0,55 ммоль/г после него. Второе значение записано приблизительно, и превращать его в точную химическую константу кератина нельзя.
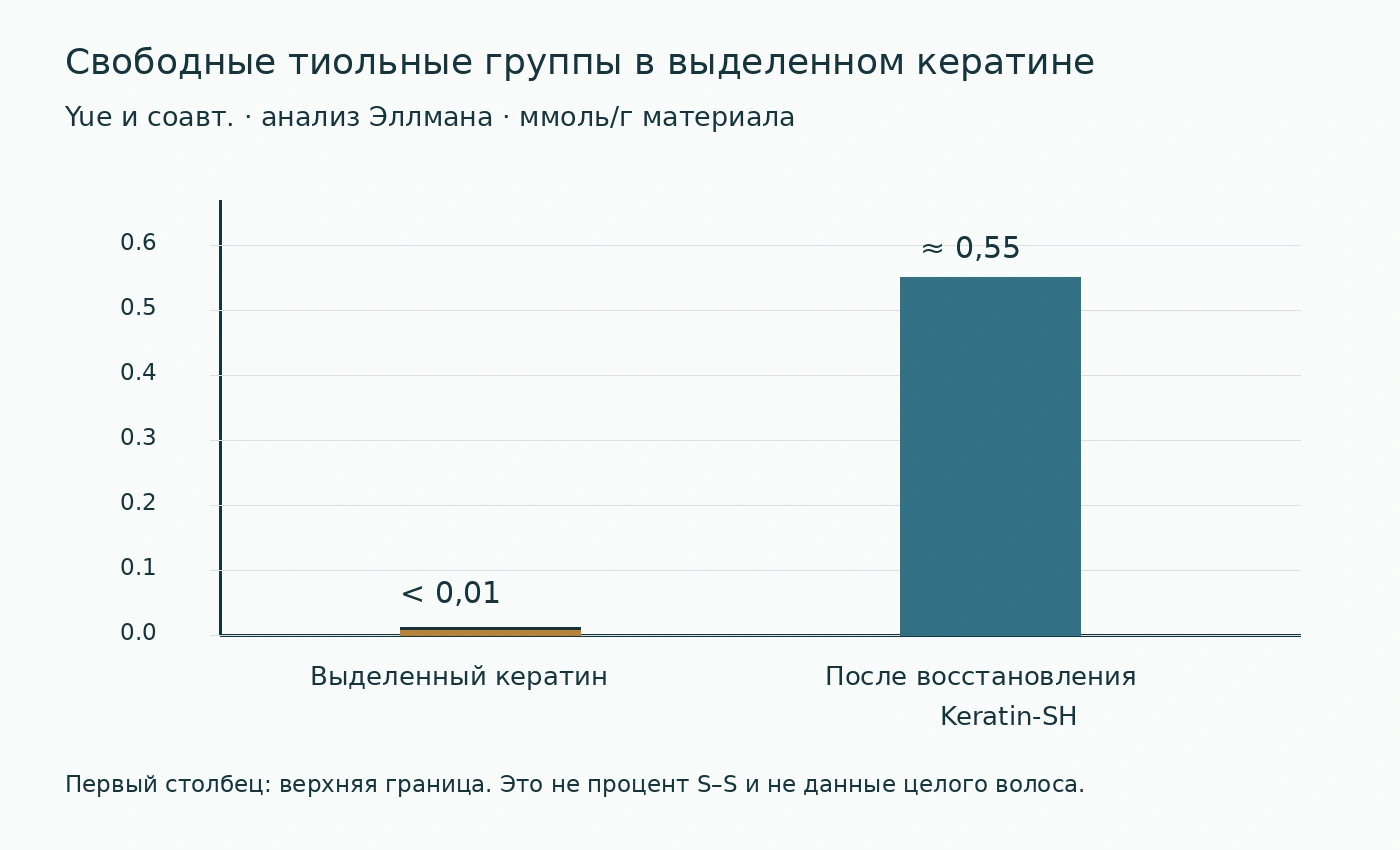
На схеме показаны результаты анализа Эллмана из работы Yue. Высота столбца для первого состояния обозначает верхнюю границу, а не измеренное точное значение; шкала относится к свободным SH на массу выделенного материала.
Миллимоль на грамм — отношение количества вещества к массе. Оно позволяет сравнить химически определяемые группы в подготовленных образцах. При этом свободная тиольная группа и дисульфидный мостик — разные объекты подсчёта. При восстановлении одной связи S–S могут возникнуть две SH-группы, но для расчёта доли изменившихся связей нужны также исходное содержание и соответствующий баланс. Одного числа 0,55 для такого расчёта недостаточно.
Результат Morioka в разделе ниже дан для цистина на массу волоса, а результат Yue — для свободных SH на массу выделенного белка. Различаются и определяемое вещество, и знаменатель. Перевод приставок «нано» и «милли» сам по себе не делает эти величины взаимозаменяемыми. Первое измерение характеризует цистин, второе — доступные анализу тиольные группы после иной подготовки материала.
Так становится понятен смысл аналитического названия. Если сообщить только «содержание серы», исчезнут сразу несколько различий: химическая форма, способ определения и материал, к массе которого отнесён результат. Для чтения экспериментальной таблицы полезнее сохранять полное выражение «свободные тиольные группы, определённые анализом Эллмана, на грамм выделенного кератина». Оно длиннее, зато определяет, какое именно свойство сравнивается.
Почему остаточный реагент мешает измерению
DTT в этой работе играет две разные роли в зависимости от стадии. Сначала он участвует в восстановлении белка. Но сам реагент содержит тиольные группы, которые могли бы внести вклад в последующее определение SH. Поэтому авторы специально подчёркивают необходимость удаления избытка DTT перед анализом Keratin-SH. Измеряемый сигнал должен характеризовать подготовленный белок, а не оставшуюся в смеси восстановительную добавку.
Это пример аналитической избирательности: чувствительность к функциональной группе ещё не обеспечивает избирательность к её носителю. Тиол в небольшой молекуле реагента и тиол, связанный с белковой структурой, относятся к одной химической категории, но отвечают на разные вопросы исследования. Очистка нужна, чтобы вопрос «сколько доступных групп есть у белка» не подменился вопросом о суммарном сигнале от смеси.
Способ очистки также оказался важен для сохранения исследуемого состояния. При попытке использовать диализ авторы не получили сопоставимого высокого содержания SH. Они предположили, что за время диализа кислород медленно окислял группы и восстанавливал дисульфидные соединения между остатками цистеина. В статье это объяснение дано как вероятное. Оно помогает понять, почему стадия подготовки образца входит в интерпретацию результата вместе с собственно приборным измерением.
Восстановление и очистка поэтому не являются одной операцией с гарантированным неизменным результатом. Первая стадия меняет функциональные группы, а вторая отделяет компоненты и может сопровождаться дальнейшими превращениями. Для читателя здесь важна последовательность состояний материала; конкретные концентрации и режимы лабораторной обработки для её понимания не нужны.
Как связаны химический анализ и слабая ИК-полоса
Yue и соавторы сопоставляли спектры FTIR выделенного кератина до и после дополнительного восстановления. После него появилась слабая дополнительная полоса около 2550 см⁻¹, которую авторы отнесли к свободным тиольным группам. Наблюдение дополняет химическое определение: анализ Эллмана и ИК-спектр дают разные виды данных об изменённом материале.
Волновое число в см⁻¹ — координата спектрального признака, тогда как ммоль/г описывает содержание групп на массу. Полоса около 2550 см⁻¹ не означает 2550 мостиков и не переводится напрямую в процент восстановления. В этой работе спектральное сравнение помогает идентифицировать появившуюся группу, а количественное значение свободных SH авторы приводят по анализу Эллмана. Эти результаты соединены общей химической задачей, но сохраняют собственные единицы и способы получения.
Почему новый кератиновый гель имеет другие связи
Далее Keratin-SH использовали для создания сети с полиэтиленгликолевым компонентом, несущим норборненовые группы. В описанной авторами реакции тиольная группа соединяется с норборненовой с образованием тиоэтерной связи. Это существенно для чтения слова «сшивка»: новая сшивка материала не обязана быть дисульфидным мостиком S–S.
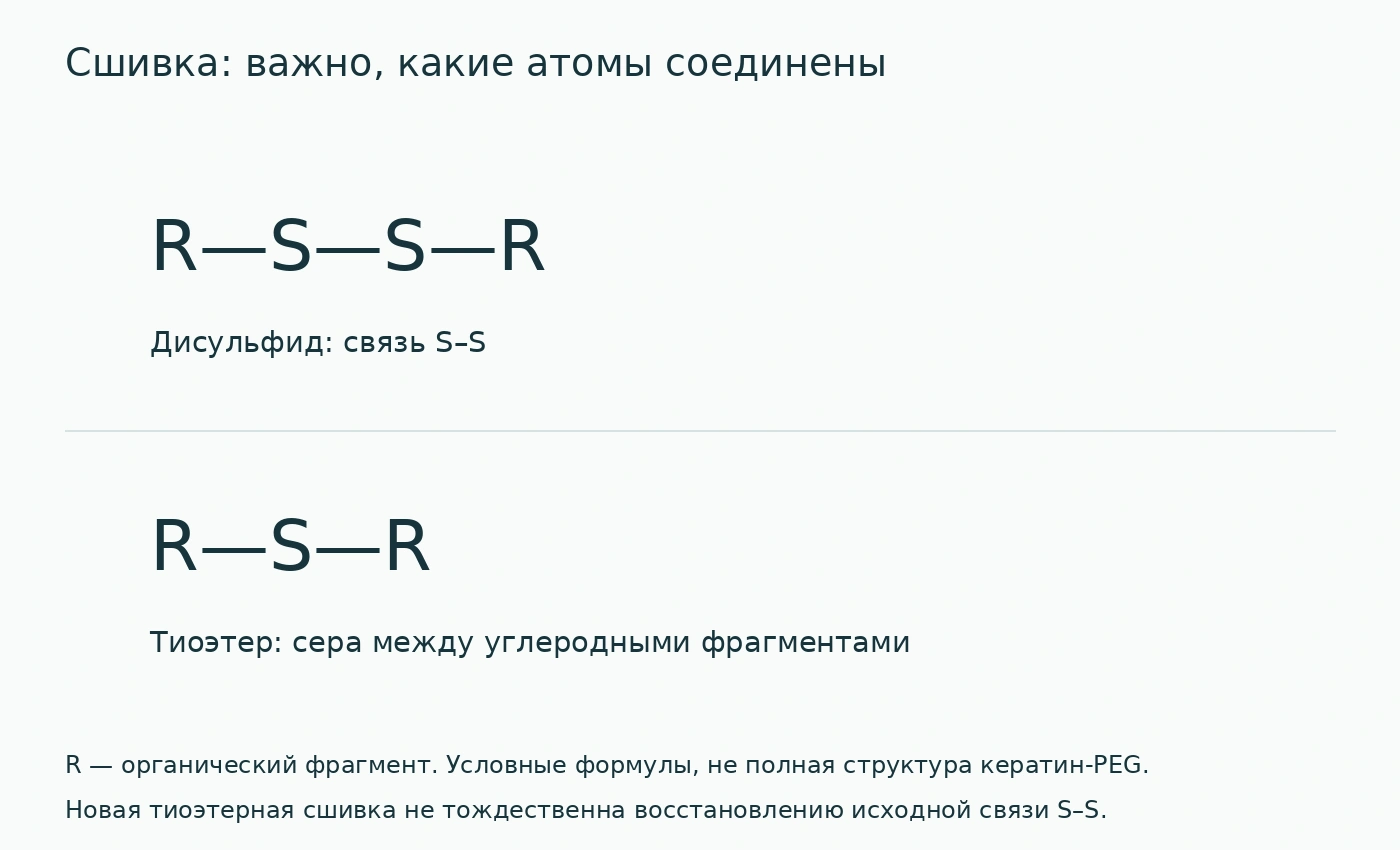
Схема различает типы соединений, а не воспроизводит полную структуру реагентов Yue. В тиоэтерном фрагменте атом серы связан с углеродными частями; в дисульфидном есть связь между двумя атомами серы.
В работе указано стехиометрическое отношение тиольных и норборненовых групп 1:1 для образования таких связей. Это отношение функциональных групп в реакции, а не массовая доля волос и не утверждение о возврате всех исходных S–S. Авторы целенаправленно создавали новый кератин-PEG-материал с иной организацией сети. Поэтому наличие кератина из волос в его составе ещё не делает гель заново собранным волосом.
Различие позволяет точнее понимать слова «восстановление» и «сшивание». Восстановительная стадия высвобождает тиольные группы, а последующая реакция использует эти группы для нового соединения. Химический тип связи в готовой сети нужно устанавливать по описанной реакции. Для дисульфида запись содержит S–S; для тиоэтерного соединения — углеродные фрагменты по обе стороны серы. Сходство исходного белка не отменяет этого различия.
Как измеряли содержание цистина в волосах?
Morioka и Kobayashi в 1997 году предложили метод количественного определения цистина с помощью дитиотреитола, сокращённо DTT. Исследователи измеряли количество окисленного DTT, образующегося при его взаимодействии с цистином. В аннотации указан максимум поглощения 283 нм.
Такой анализ использует химическую реакцию как способ получить измеримый оптический сигнал. Прибор не фотографирует каждый мостик и не считает перемычки на изображении. Между исходным волосом и числом в результате находятся реакция и измерение поглощения.
Авторы отдельно проверяли связь сигнала с массой волос. В доступной аннотации для поглощения A280 приведена зависимость y = 0,10x + 0,06, где x — масса в миллиграммах; коэффициент корреляции r = 1,00, n = 10. Обозначение A280 следует отличать от упомянутого максимума 283 нм: это две записи из описания конкретного метода, которые нельзя молча заменить одной длиной волны.
Повторяемость внутри серии и между днями оценивали отдельно. Коэффициенты вариации составили 3,1 и 2,8 процента соответственно; для каждой оценки указано n = 5. Эти показатели описывают воспроизводимость анализа в работе, а не изменчивость количества связей у всех людей.
Почему два метода дали разные числа
В той же работе содержание цистина определяли предложенным способом и аминокислотным анализатором. Результаты выражены в наномолях на миллиграмм волоса, как среднее и стандартное отклонение.
| Способ определения в работе Morioka и Kobayashi | Содержание цистина, нмоль/мг | Указанное n |
|---|---|---|
| Метод с DTT | 903 ± 50,6 | 10 |
| Аминокислотный анализатор | 755 ± 24,9 | 10 |
Это результаты одного исследования, а не нормативный диапазон и не порог повреждения. Два способа дали различающиеся значения. Поэтому запись «содержание цистина» без названия метода теряет существенную часть смысла.
Нанометр и наномоль тоже нельзя смешивать. Первый описывает длину, второй — количество вещества. В таблице стоит количество цистина на массу образца, а не расстояние между белками и не толщина серного слоя.
Анализ содержания отвечает на вопрос «сколько вещества определил данный метод». Он не сообщает автоматически, какие именно участки белков были соединены. Для локализации химических изменений нужна другая аналитическая задача.
Что показали восстановление и повторное окисление
Исследование Hilterhaus-Bong и Zahn опубликовано в 1989 году. Авторы изучали белковую химию перманентной завивки с помощью аминокислотного анализа и баланса серосодержащих компонентов. Здесь оно полезно как эксперимент о превращениях связей, без переноса лабораторных условий в домашнюю практику.
При увеличении продолжительности восстановительной стадии в последующей стадии окисления заново образовывалось меньше дисульфидных связей. Одновременно авторы регистрировали выход серосодержащего материала из волоса. Между стадиями имело значение и замачивание образцов в воде.
Следовательно, последовательность «восстановили — окислили» сама по себе ещё не доказывает возврат к исходной структуре. В работе оценивали не только факт проведения второй стадии, но и фактические химические результаты после неё.
Свободные SH-группы и цистеиновая кислота использовались как измеряемые признаки неполного восстановления исходной системы связей. Это разные химические формы. Их наличие не стоит объединять общим словом «сера», если задача — понять механизм превращения.
Доступная аннотация также описывает зависимость результата от условий обработки. Однако она не даёт универсальной эффективности для любых волос, составов или процедур. Числа из отдельного лабораторного протокола не становятся рецептом и не подтверждают обещание полного восстановления белковой сети.
Всегда ли меньше S–S означает меньшую упругость?
Работа Breakspear, Noecker и Popescu 2019 года проверяет именно эту упрощённую логику. Авторы предложили механохимическую модель вклада водородных и дисульфидных связей в модуль Юнга жёстких альфа-кератиновых волокон. Экспериментальная часть включала наноиндентирование продольных и поперечных сечений атомно-силовым микроскопом.
После окислительной обработки значительная часть дисульфидных связей разрушалась. Вместе с тем возникали компенсирующие водородные взаимодействия. В сухих условиях упругость оставалась сопоставимой с исходным волокном. Значит, один и тот же механический результат может складываться из разного набора взаимодействий.
Влажность меняла картину.
Авторы различают исходные водородные связи типа 1 и вновь образованные связи типа 2. По их описанию, второй тип более лабилен. Эти обозначения принадлежат модели данной работы: их не нужно воспринимать как бытовую классификацию всех связей в волосе.
Модельный расчёт потери дисульфидных связей сопоставили со снижением цистина, измеренным аминокислотным анализом. Такое сопоставление связывает механический и химический подходы, но не превращает обычное ощущение мягкости волос в количественный химический анализ.
Модуль Юнга, прочность и внешний вид — разные характеристики. Модуль описывает упругий ответ в выбранной постановке измерения. Для прочности на разрыв важен результат доведения образца до разрушения. Сходный модуль в сухом опыте не означает одинакового поведения при любой влажности или одинаковой разрывной нагрузке.
Как находят изменённые участки кератина
Plowman и соавторы в 2025 году исследовали два основных кератина человеческих волос: K31 типа I и K85 типа II. Волосы подвергали ускоренным последовательным тепловым либо ультрафиолетовым воздействиям. Затем извлекали белки и изучали их методом жидкостной хроматографии с тандемной масс-спектрометрией, LC-MS/MS.
Белковые фрагменты идентифицировали сопоставлением с базами данных. Участки модификаций затем наносили на известные структурные домены кератинов. Здесь вопрос уже не только в суммарном количестве цистина: исследователи выясняли, где в белке возникают изменения.
После обоих видов воздействия обнаруживали модификации цистеиновых остатков, нарушающие дисульфидные связи, включая образование цистеиновой кислоты и дегидроаланина. Изменения находили как в относительно аморфных головных областях, так и в более структурированных спиральных областях белков.
В аннотации головные области связываются со взаимодействием с кератин-ассоциированными белками, а спиральные — с другими кератинами. Это позволяет обсуждать последствия с учётом места изменения, вместо представления о равномерном разрушении всех мостиков сразу.
Исследование использует ускоренную лабораторную модель. По доступной аннотации нельзя восстановить все температуры, дозы УФ, число доноров и полный режим обработки. Поэтому эти параметры здесь не приводятся, а результаты не пересчитываются в безопасное число укладок или часов на солнце.
Какие вопросы решают разные исследования
| Вопрос | Что измеряли | Что остаётся за пределами результата |
|---|---|---|
| Сколько цистина определено в образце? | Химический анализ и поглощение в работе 1997 года | Точное положение каждой связи в белке |
| Все ли связи образовались заново после обработки? | Аминокислотный состав, SH-группы и баланс серы в работе 1989 года | Универсальный результат любой процедуры |
| Как связи участвуют в упругости? | Наноиндентирование и механохимическая модель 2019 года | Прямое бытовое измерение количества связей |
| Где возникают химические модификации? | LC-MS/MS и карта доменов K31/K85 в работе 2025 года | Полная карта всех белков любого волоса |
Эти подходы дополняют друг друга. Химическое содержание, расположение изменений и механическое поведение — отдельные результаты. Свести их к одному «проценту здоровья волоса» на основании перечисленных работ нельзя.
Частые вопросы
Цистин и цистеин — одно и то же?
Нет. Цистеин содержит тиольную группу, а цистин обозначает пару, соединённую дисульфидной связью. Это различие помогает понять, почему отдельно определяют цистин и свободные SH-группы.
Дисульфидная связь — это водородная связь?
Нет. S–S — ковалентная связь между атомами серы. Водородные взаимодействия относятся к другому типу. В работе 2019 года их вклады в упругость рассматриваются совместно, но не приравниваются друг к другу.
Можно ли узнать число мостиков по внешнему виду волоса?
В описанных работах для этого использовались аналитические методы. Цвет, блеск и ощупывание не заменяли химическое определение цистина или картирование белковых модификаций.
Повторное окисление обязательно возвращает исходную структуру?
Нет такого вывода из исследования 1989 года. Оно показывает зависимость повторного образования связей от условий опыта и случаи неполного восстановления. Переносить результат на конкретный косметический продукт без его собственных данных нельзя.
Источники
- Morioka Y, Kobayashi K. Colorimetric determination of cystine (disulfide bond) in hair using dithiothreitol. 1997. PubMed.
- Hilterhaus-Bong S, Zahn H. Contributions to the chemistry of human hair: III. Protein chemical aspects of permanent waving treatments. 1989. PubMed.
- Breakspear S, Noecker B, Popescu C. Relevance and Evaluation of Hydrogen and Disulfide Bond Contribution to the Mechanics of Hard α-Keratin Fibers. 2019. PubMed.
- Plowman JE et al. Key locations of oxidative damage in human hair keratins after heat and ultraviolet light exposure. 2025. PubMed.
- Yue K et al. Visible light crosslinkable human hair keratin hydrogels. Полный текст.
Планируете процедуру?